


 text in
 English (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO

 Permalink


INTRODUCCIÓN
La habilla o frijol común (Phaseolus vulgaris L.) es una de las leguminosas más consumidas en nuestro país, se encuentra ampliamente distribuida en la región oriental, siendo cultivada en monocultivo y en cultivos asociados principalmente con el maíz. Su consumo en fincas de la agricultura familiar se da principalmente en estado verde (inmaduro). La superficie cultivada en Paraguay varía según la temporada y las condiciones climáticas, pero generalmente se estima en alrededor de 20.000 a 30.000 hectáreas anuales. La producción se concentra en los departamentos de Alto Paraná, Itapúa, Caaguazú, San Pedro y Canindeyú (MAG, 2022).
El frijol común, durante un periodo de por lo menos 7.000 a 8.000 años que comprende la fase de domesticación inicial y subsecuente evolución bajo cultivo, ha evolucionado de su forma silvestre con un tipo de guía (hábito indeterminado) hasta uno de mata (hábito determinado), llegando a ser en el mundo una leguminosa domesticada muy importante para la alimentación (Flores-de la Cruz, Garcia-Esteva, Garcia-Nava, Kohashi-Shibata y Ybarra-Moncada, 2018).
La distribución actual de la habilla silvestre abarca una gran área geográfica: desde el norte de México hasta el noroeste de Argentina (Toro, Tohme y Debouck, 1990). En general, se reconocen dos acervos genéticos ecogeográficos principales: Mesoamérica y los Andes (Bitocchi et al., 2012). Según el estudio de Bitocchi y colaboradores, ambos acervos genéticos de Sudamérica se originaron a través de diferentes eventos migratorios de las poblaciones mesoamericanas características del centro de México.
Para Casañas, Sino Casals y Prohen (2017), una variedad local es una población dinámica de una especie de planta cultivada; un grupo heterogéneo que evolucionó en una determinada zona ecogeográfica y está adaptado a las condiciones edáficas y climáticas, así como a los regímenes de manejo locales y los modos tradicionales de uso.
En el Paraguay existen varias razas consideradas locales que fueron introducidas en diferentes momentos y que presentan características específicas. Las variedades locales tienen requisitos de crecimiento específicos y agroambientes definidos que muestran una variabilidad fenotípica inter e intravarietal (Carovic-Stanko et al., 2017).
Existe una diversidad fenotípica significativa dentro del frijol común que se refleja en la variedad de formas cultivadas. Esta diversidad está organizada en forma de colecciones genéticas preservadas en bancos de genes e institutos de investigación, que albergan semillas de cultivares tradicionales y modernos, razas locales y parientes silvestres (Savić, Zorić y Brdar-Jokanović, 2020).
Las razas locales son de especial interés ya que representan material genéticamente diverso con rasgos específicos para la región de crecimiento (Savić et al., 2020). Aunque las razas locales han sido reemplazadas por cultivares modernos, siguen siendo una parte valiosa de la agricultura y la dieta tradicionales, especialmente en áreas marginales y rurales (Mallor, Barberan y Albar, 2018).
En la clasificación e identificación de especies, razas y variedades vegetales, los rasgos morfológicos desempeñan un papel importante (Meza-Vázquez, Lépiz-Ildefonso y López-Alcocer, 2015). La caracterización morfológica se considera la forma más accesible de caracterizar un genotipo, ya que es importante para comprender su potencial y uso adecuado (Hamouda, Haider, Elbehairy y Elshanshory, 2020).
El análisis de diversidad genética de las poblaciones de habilla es útil para los programas de mejoramiento, ya que ayuda a seleccionar material genético que se utilizará para posteriores cruces (Hegay et al., 2014) y en los bancos de germoplasma a identificar duplicados de accesiones. En habilla existen varios trabajos realizados demostrando diversidad entre las accesiones: Neupane, Shrestha, Vaidya, Bhattarai y Darai (2005); Chhetri y Bhatta (2017); Flores-de la Cruz, Garcia-Esteva, Garcia-Nava, Kohashi-Shibata, y Ybarra-Moncada (2018); Bareke (2019); Hussain-Shah, Khaliq, Bashir y Jannat (2020); De Paula et al. (2024).
En la actualidad existen varios métodos de análisis para el estudio de la diversidad genética, utilizando datos tanto fenotípicos como genéticos. Según Chhetri y Bhatta (2017), los caracteres agro-morfológicos de la planta son los más preferidos para la caracterización de genotipos ya que son más baratos y fáciles de evaluar.
Los análisis multivariados pueden ser utilizados para el estudio de la diversidad genética; la distancia Euclidiana es una de ellas que utiliza datos estandarizados y determina medidas de disimilaridad entre accesiones. Varios autores han demostrado que estos análisis constituyen una herramienta estadística eficiente para diferenciar genotipos, agrupándolos y/o clasificándolos con atributos importantes para los procesos selectivos en programas de mejoramiento genético.
Estudios relacionados con los recursos fitogenéticos, como aquellos que involucran la recolección, caracterización y mantenimiento de bancos de germoplasma, surgen como una estrategia prometedora para la conservación de especies importantes, como el frijol común (De Paula et al., 2024).
El conocimiento de las distancias genéticas entre las razas locales se ha vuelto determinante para mejorar la productividad de las variedades de habilla mediante programas de mejoramiento y establecer mecanismos de conservación. Considerando estos aspectos, se propone este trabajo con el objetivo de evaluar la diversidad genética entre accesiones de habilla disponibles en el banco de germoplasma del CIAF a partir de datos morfo-agronómicos, con fines de uso para futuros programas de mejoramiento genético.
MATERIALES Y MÉTODOS
El trabajo se realizó en el Centro de Investigación para la Agricultura Familiar del Instituto Paraguayo de Tecnología Agraria (CIAF-IPTA) localizado en el Departamento de San Pedro, a 220 km al noreste de Asunción, a 24° 10' de Latitud Sur y 56° 37' de Longitud Oeste de Greenwich, y altitud de 220 msnm.
Se estudiaron 20 accesiones de habilla del banco de germoplasma del CIAF de Choré. Cada accesión fue identificada con el código de entrada: PRYH-0001, PRYH-0002, PRYH-0003, PRYH-0004, PRYH-0005, PRYH-0006, PRYH-0007, PRYH-0008, PRYH-0009, PRYH-0010, PRYH-0011, PRYH-0012, PRYH-0013, PRYH-0014, PRYH-0015, PRYH-0016, PRYH-0017, PRYH-0018, PRYH-0019, PRYH-0020. Estas accesiones fueron colectadas desde la década de los años 80 y carecen de datos de pasaporte completos. Para este estudio se utilizó la colección completa disponible en el centro de investigación
Las variables consideradas para el estudio fueron: altura de planta medida en centímetros (cm) desde la base del tallo hasta el ápice en cinco plantas representativas; longitud de raíz en centímetros (cm) desde la base del tallo hasta el extremo de la raíz principal en las mismas cinco plantas; longitud de vaina en centímetros (cm) medida desde la base hasta el ápice en cinco vainas seleccionadas aleatoriamente; diámetro de vaina (cm) medido en la parte más amplia entre las suturas dorsal y ventral en las mismas cinco vainas; longitud y ancho de semilla (cm) medidos en la parte más larga y más ancha, respectivamente, en cinco semillas representativas; número de vainas por planta contabilizado en las cinco plantas seleccionadas; número de granos por vaina contados en las cinco vainas seleccionadas; peso de 100 granos (g) obtenido mediante el conteo y pesaje de cien semillas; rendimiento con vainas (kg ha⁻¹) correspondiente al peso total de vainas (cáscara con granos) cosechadas de la parcela útil; y rendimiento de granos (kg ha⁻¹) correspondiente al peso neto de granos obtenidos de la misma parcela útil.
Los datos originales fueron estandarizados y sometidos a análisis multivariados. La estimación de la diversidad genética fue obtenida por las medidas de disimilaridad media (DMM) con base en la distancia Euclidiana media. Para la delimitación de grupos se utilizó el método de dendrograma Unweighted Pair Group Method with Arithmetic Mean (UPGMA), que atribuye siempre el mismo peso a los dos elementos que están siendo integrados, lo que produce como efecto que los últimos elementos integrados tienen mayor influencia que los primeros. También se empleó el agrupamiento de optimización de Tocher, que divide un conjunto de objetos en grupos homogéneos, minimizando la variabilidad dentro de los grupos y maximizando la variabilidad entre ellos. El estudio de la importancia relativa de los caracteres en la predicción de la divergencia genética se realizó con base en el método propuesto por Singh (1981), que considera las interacciones entre caracteres a través de la matriz de covarianzas, dividiendo la varianza de cada carácter por la diversidad total y multiplicando por 100 para expresarlo como porcentaje. Para todos los análisis estadísticos se utilizó el programa GENES (Cruz, 2016), un software de uso libre aplicado para análisis estadísticos y biométricos multivariados, ampliamente utilizado por investigadores del área.
RESULTADOS Y DISCUSIÓN
Se observaron grandes variaciones entre las accesiones, donde las mayores distancias se registraron entre PRY H 0001 con PRY H 0014 y PRY H 0005 con PRY H 0014, con valores de 0,740 y 0,697 respectivamente. Las menores distancias genéticas fueron observadas entre PRY H 0007 con PRY H 0012, con valor de 0,081, y PRY H 0009 con PRY H 0017, con valor de 0,108 (Tabla 1). Elias, Vidigal, Gonela e Vogt (2007) sugieren que para los programas de mejoramiento deben ser utilizados en cruzamientos aquellos genotipos que combinen elevada productividad con alta divergencia genética.
Tabla 1 Mayores y menores distancias genéticas entre accesiones de habilla basadas en la distancia Euclidiana media. Choré, Paraguay, 2024.
| Genotipos | Mayores distancias | Menores Distancias | ||||
|---|---|---|---|---|---|---|
| Genotipos | Valor | Genotipos | Valor | |||
| PRY H 0001 | PRY H 0014 | 0,740 | PRY H 0009 | 0,206 | ||
| PRY H 0002 | PRY H 0005 | 0,599 | PRY H 0004 | 0,132 | ||
| PRY H 0003 | PRY H 0005 | 0,477 | PRY H 0018 | 0,236 | ||
| PRY H 0004 | PRY H 0005 | 0,601 | PRY H 0002 | 0,132 | ||
| PRY H 0005 | PRY H 0014 | 0,697 | PRY H 0008 | 0,337 | ||
| PRY H 0006 | PRY H 0014 | 0,500 | PRY H 0008 | 0,154 | ||
| PRY H 0007 | PRY H 0014 | 0,509 | PRY H 0012 | 0,081 | ||
| PRY H 0008 | PRY H 0014 | 0,550 | PRY H 0011 | 0,134 | ||
| PRY H 0009 | PRY H 0014 | 0,604 | PRY H 0017 | 0,108 | ||
| PRY H 0010 | PRY H 0014 | 0,555 | PRY H 0011 | 0,152 | ||
| PRY H 0011 | PRY H 0014 | 0,518 | PRY H 0008 | 0,134 | ||
| PRY H 0012 | PRY H 0001 | 0,557 | PRY H 0010 | 0,180 | ||
| PRY H 0013 | PRY H 0005 | 0,574 | PRY H 0007 | 0,209 | ||
| PRY H 0014 | PRY H 0001 | 0,740 | PRY H 0004 | 0,326 | ||
| PRY H 0015 | PRY H 0005 | 0,484 | PRY H 0018 | 0,161 | ||
| PRY H 0016 | PRY H 0014 | 0,468 | PRY H 0007 | 0,142 | ||
| PRY H 0017 | PRY H 0014 | 0,569 | PRY H 0009 | 0,109 | ||
| PRY H 0018 | PRY H 0013 | 0,480 | PRY H 0015 | 0,161 | ||
| PRY H 0019 | PRY H 0005 | 0,640 | PRY H 0013 | 0,237 | ||
| PRY H 0020 | PRY H 0014 | 0,493 | PRY H 0017 | 0,194 | ||
| Máximo: 0,740 Accesos 1 y 14 | Mínimo: 0,081 Accesos 7 y 12 | |||||
En el trabajo realizado por De Paula et al. (2024) con la matriz de disimilitud de Gower, se mostró que las accesiones IFES 18 e IFES 45 fueron las más distantes con un valor de 1,10. Por otro lado, IFES 25 e IFES 67 fueron consideradas las accesiones más cercanas con una distancia de 0,09.
Elias et al. (2007) mencionaron que, a pesar de la diversidad constatada entre los genotipos de manera general, los que interesan a los fitomejoradores son aquellos superiores en relación a las características más importantes y que presentan diversidad suficiente para generar variabilidad en las poblaciones segregantes.
Las accesiones PRYH-0014 y PRYH-0005 fueron los genotipos menos similares, participando en 14 y 9 distancias mayores, respectivamente. Entre las accesiones más similares se encontraron PRYH-0007 y PRYH-0011, que participaron en 8 y 7 distancias menores, respectivamente (Tabla 2).
Tabla 2 Medidas de disimilaridad entre accesiones de habilla. Choré, Paraguay, 2024.
| Accesos | Menos Similares | Promedio | Más Similares | Promedio | ||||
| PRY H 0001 | 14 | 19 | 2 | 0,6 | 9 | 17 | 8 | 0,3 |
| PRY H 0002 | 5 | 1 | 9 | 0,6 | 4 | 3 | 15 | 0,3 |
| PRY H 0003 | 5 | 13 | 1 | 0,5 | 18 | 4 | 15 | 0,3 |
| PRY H 0004 | 5 | 1 | 9 | 0,5 | 2 | 3 | 15 | 0,2 |
| PRY H 0005 | 14 | 19 | 4 | 0,6 | 8 | 6 | 11 | 0,3 |
| PRY H 0006 | 14 | 2 | 4 | 0,5 | 8 | 16 | 7 | 0,2 |
| PRY H 0007 | 1 | 14 | 5 | 0,4 | 16 | 11 | 10 | 0,2 |
| PRY H 0008 | 14 | 2 | 4 | 0,5 | 11 | 17 | 6 | 0,1 |
| PRY H 0009 | 14 | 2 | 19 | 0,5 | 17 | 8 | 1 | 0,2 |
| PRY H 0010 | 14 | 2 | 1 | 0,5 | 11 | 7 | 12 | 0,2 |
| PRY H 0011 | 14 | 2 | 4 | 0,5 | 8 | 17 | 7 | 0,1 |
| PRY H 0012 | 1 | 5 | 14 | 0,5 | 10 | 7 | 20 | 0,2 |
| PRY H 0013 | 5 | 1 | 14 | 0,5 | 7 | 19 | 16 | 0,2 |
| PRY H 0014 | 1 | 5 | 9 | 0,7 | 4 | 19 | 2 | 0,4 |
| PRY H 0015 | 5 | 13 | 10 | 0,4 | 18 | 3 | 20 | 0,2 |
| PRY H 0016 | 14 | 2 | 4 | 0,4 | 7 | 11 | 8 | 0,2 |
| PRY H 0017 | 14 | 2 | 4 | 0,5 | 9 | 8 | 11 | 0,1 |
| PRY H 0018 | 13 | 19 | 14 | 0,5 | 15 | 3 | 9 | 0,2 |
| PRY H 0019 | 5 | 1 | 18 | 0,6 | 13 | 7 | 12 | 0,3 |
| PRY H 0020 | 14 | 5 | 1 | 0,5 | 17 | 7 | 11 | 0,2 |
La alta distancia promedio entre las accesiones estudiadas en este trabajo indica el elevado nivel de diversidad genética de los genotipos obtenidos (De Paula et al., 2024).
La diversidad encontrada entre las accesiones es de gran importancia desde todo punto de vista agronómico para uso actual o futuro. Según Chhetri y Bhatta (2017), el mantenimiento de esta diversidad es fundamental para desarrollar y apoyar programas de mejora genética e incrementar la productividad. Bareke (2019) mencionan que la caracterización y evaluación del germoplasma disponible de variedades locales de frijol común son muy importantes para facilitar los esfuerzos de mejoramiento.
Una mayor disimilitud es importante en trabajos donde se realizan cruzamientos con el objetivo de recombinar características parentales, así como promover una mayor segregación en un programa de mejoramiento, aumentando la posibilidad de seleccionar individuos superiores en generaciones segregantes (Nogueira et al., 2021)
El agrupamiento de accesiones por el método de Tocher tiene como principio mantener la homogeneidad dentro y heterogeneidad entre los grupos. Las accesiones se organizaron en seis grupos, donde el primer grupo está constituido por 11 accesiones. El grupo 2 está formado por 5 accesiones y los demás grupos están constituidos por apenas una accesión cada uno (Tabla 3).
Tabla 3 Agrupamiento de accesiones de habilla mediante el método de optimización de Tocher. Choré, Paraguay, 2024.
| Grupos | Accesos |
| < 1 > | PRYH-0009 PRYH-0017 PRYH-0008 PRYH-0011 PRYH-0006 PRYH-0016 PRYH-0007 PRYH-0020 PRYH-0010 PRYH-0012 PRYH-0013 |
| < 2 > | PRYH-0002 PRYH-0004 PRYH-0003 PRYH-0015 PRYH-0018 |
| < 3 > | PRYH-0014 |
| < 4 > | PRYH-0019 |
| < 5 > | PRYH-0001 |
| < 6 > | PRYH-0005 |
La formación de diferentes grupos muestra comportamientos diferenciados entre las accesiones evaluadas. Los genotipos pertenecientes al mismo grupo presentan caracteres comunes o comparten genes, mientras que los individuos de grupos diferentes presentan mayor distancia genética; por tanto, al ser cruzados se podría obtener un mayor efecto heterótico, favoreciendo el éxito en la selección y recombinación en los programas de mejoramiento genético.
Neupane et al. (2005) mencionan que la variación agromorfológica observada en las variedades locales puede presentar suficiente alcance para la selección de variedades adecuadas para diversos sistemas de producción.
Las mayores distancias entre grupos fueron observadas entre el G3 y G5, y entre G3 y G6, con valores de 0,73 y 0,69 respectivamente. En tanto, las menores distancias entre grupos se observaron entre G1 y G4, y entre G3 y G4, con valores de 0,34 y 0,36 respectivamente (Figura 1).
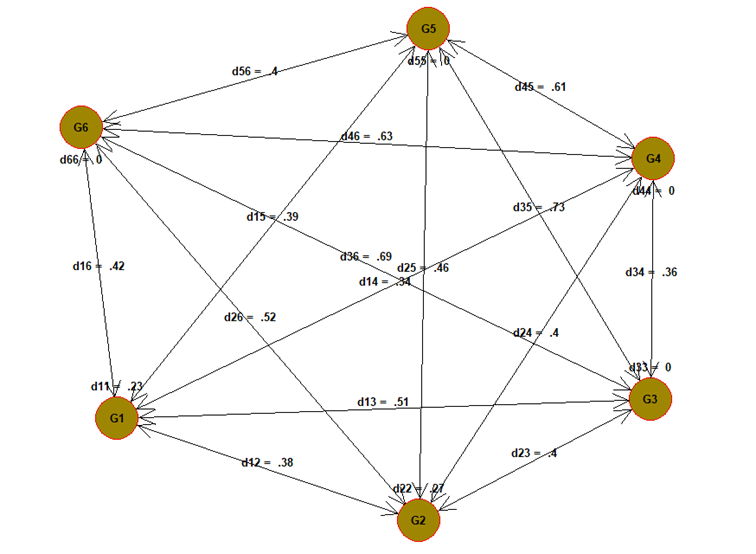
Figura 1 Distancias genéticas entre grupos formados por el método de Tocher con accesiones de habilla. Choré, Paraguay, 2024.
De Paula et al. (2024) también observaron una marcada formación de grupos genéticos en su trabajo con habilla, al igual que Cabral et al. (2011) y Nasar, Ostevik, Murtaza y Rausher (2022).
La diversidad dentro de una especie de cultivo es fundamental para el desarrollo de nuevos productos y, en consecuencia, debe ser preservada para las generaciones futuras (Bareke, 2019). Asimismo, Hussain-Shah et al. (2020) mencionan la importancia de la diversidad genética para iniciar un programa de mejoramiento genético en frijol.
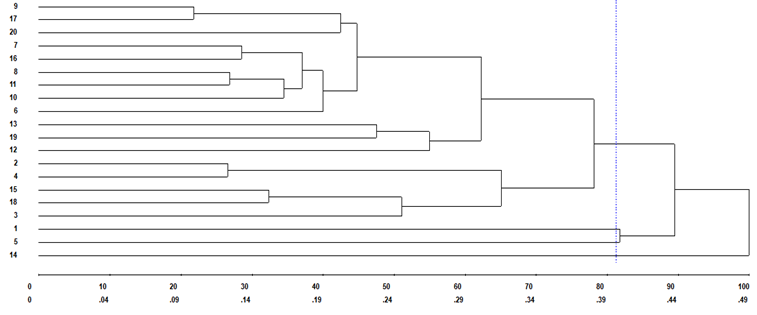
En el agrupamiento del dendrograma UPGMA fueron identificados cuatro grupos, siendo el primer grupo conformado por 17 accesiones, mientras que las accesiones PRYH-0014, PRYH-0005 y PRYH-0001 pertenecen en forma individual a cada uno de los tres grupos restantes (Figura 2).
Los caracteres que contribuyeron en mayor proporción a la distancia genética fueron el rendimiento con vaina y el rendimiento de granos, con valores de 70,246% y 29,751% respectivamente. En tanto, los caracteres de menor importancia fueron la longitud de vaina, el diámetro de vaina, la longitud de semilla, el ancho de semilla y el número de granos por vaina (Tabla 4).
La característica número de semillas por vaina es de gran importancia en la productividad del frijol (De Paula et al., 2024). En general, los genotipos con altos valores de esta característica se seleccionan para programas de mejoramiento enfocados en aumentar la producción de cultivos (Stoilova, Pereira, de Sousa y Carnide, 2005).
La característica principal en la que se centran los programas de mejoramiento es el rendimiento; sin embargo, esta característica es muy compleja ya que involucra varios genes que actúan directa o indirectamente sobre el rendimiento de grano (Nascimento, Daher, Santos y Souza, 2022).
Tabla 4 Contribución relativa (%) de los caracteres evaluados a la distancia genética según el método de Singh (1981). Choré, Paraguay, 2024.
| Variables | S.J | Valor (%) |
|---|---|---|
| Altura de Planta | 20.007,11 | 0,0008 |
| Longitud de Raíz | 1.366,22 | 0,0001 |
| Longitud de Vaina | 545,448 | 0,000 |
| Diámetro de Vaina | 5,567 | 0,000 |
| Longitud de Semilla | 23,905 | 0,000 |
| Ancho de Semilla | 4,172 | 0,000 |
| Número de Grano por vaina | 795,000 | 0,000 |
| Número de vaina por planta | 7.813,777 | 0,0003 |
| Peso de 100 granos | 30.764,000 | 0,0012 |
| Rendimiento con Vainas | 1.731.243.055,59 | 70,246 |
| Rendimiento de granos | 733.222.222,36 | 29,751 |
El cálculo de la importancia relativa de los caracteres es estimado como la contribución de los componentes de la distancia genética en el total de la disimilaridad observada relativos a cada variable (Albuquerque Lins Neto, Atroch y Nascimiento Filho, 2020). Entre las características de mayor contribución para la distancia genética fue el rendimiento con vainas, seguido por el rendimiento de granos.
CONCLUSIÓN
Aprovechamiento de la diversidad genética: Las accesiones evaluadas exhiben una significativa diversidad genética, la cual puede ser estratégicamente aprovechada en programas de cruzamiento para mejorar variedades existentes o desarrollar nuevas. Este potencial sugiere la existencia de accesiones adecuadas para aplicaciones inmediatas.
Formación de grupos basados en distancia genética: Se identificaron seis grupos mediante el método de Tocher y cuatro grupos mediante el dendrograma UPGMA, caracterizados por diferentes grados de similitud entre sus miembros. Este hallazgo proporciona un marco claro para la selección de accesiones con fines específicos de mejora genética.
Contribución de las variables de rendimiento: El rendimiento con vainas (70,246%) y el rendimiento de granos (29,751%) emergieron como los factores más influyentes en la determinación de la distancia genética entre las accesiones evaluadas. Estos resultados subrayan la importancia de considerar estas características clave en futuras estrategias de selección y mejoramiento.

