


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO

 Permalink


INTRODUCCIÓN
La región nordeste de la Argentina es muy rica florísticamente (Martínez Crovetto, 1963; Carnevali, 1994) y hay especies vegetales arvenses (Gliessmann, 2002) que, en el sentido agronómico, pueden interferir en la actividad de los cultivos, afectando su capacidad de producción y desarrollo normal por la competencia de agua, luz, nutrientes y espacio físico (Blanco y Leyva, 2007). Algunas de estas arvenses que se comportan como malezas tienen un hábito de crecimiento escandente (Font Quer, 1975; Cabanillas y Hurrell, 2012) y, por sus características biológicas, son frecuentes o comunes en muchos agroecosistemas, pudiendo llegar a convertirse en muy perjudiciales, es decir, pueden ocasionar un daño económico en los diversos cultivos, ya sean estos perennes, anuales o bianuales. Este perjuicio puede suceder en el campo o en alguna etapa de poscosecha (Marzocca, 1994). Además de competir por los recursos antes mencionados, también pueden ocasionar daños mecánicos o bien servir de hospederas a organismos que pueden convertirse en patógenos y plagas.
Con el fin de realizar un manejo integrado de malezas (Fernández, 1982), es necesario conocer, entre otras cosas y con la suficiente antelación, los taxones presentes y que podrían llegar a ser un problema durante el cultivo o en etapas posteriores. De las diversas formas de vida vegetales, el de las "escandentes" es uno de los más ricos florísticamente y agresivos en los cultivos en que se presentan (Dávalos, 2017; Dávalos et al., 2019). Están representadas en la región en estudio por familias botánicas como Convolvulaceae, Cucurbitaceae y Aristolochiaceae, entre otras. Desde un enfoque holístico, el Manejo Integrado de Malezas (MIM) es una de las herramientas más importantes para realizar una agricultura sustentable y, para ello, el monitoreo y detección temprana de posibles especies perjudiciales nos permitirá prevenir y así evitar infestaciones de gravedad.
La familia Convolvulaceae Juss. presenta el mayor número de taxones escandentes, siendo Ipomoea su género más numeroso, con 52 especies registradas en Argentina (Chiarini y Ariza Espinar, 2006); entre ellas, algunas son malezas y otras resultan tóxicas para el ganado (Ríos et al., 2007). La información sobre especies de malezas en cultivos del norte argentino es escasa o parcial, especialmente aquellas de hábito escandente o presentes en cultivos regionales.
Diversos estudios han documentado la presencia de estas especies. Dávalos, Vanni y López (2018); Dávalos, et al. (2019) y Dávalos et al. (2023) analizaron los cultivos de yerba mate y té en Misiones y Corrientes, destacando la importancia de individuos con esta forma de vida. Para el cultivo de yerba mate específicamente, se encuentran los trabajos de Burtnik (2006) y Dávalos (2017).
En cuanto al cultivo de algodón, la guía de malezas de Royo Simonella, et al. (2022) ofrece abundante información con ilustraciones, claves y descripciones, incluyendo a Ipomoea nil, sobre cuyo poder germinativo tratan en detalle Dávalos y Vucko (2020). Por su parte, Freitas Leitao Filho, Aranha o Bacchi (1972) documentaron malezas en el estado de São Paulo, Brasil, registrando varias especies escandentes relevantes también para nuestra región. Para la región del Río Dulce en Santiago del Estero, Carrizo y Sobrero (2001) estudiaron 8 especies del género Ipomoea, documentando tanto su uso ornamental como su presencia ocasional en cultivos. Estos autores desarrollaron claves ilustradas para identificar las especies en estados de semilla, plántula y planta adulta, aunque sin incluir descripciones detalladas.
El objetivo del presente trabajo fue reconocer, describir y diferenciar 11 taxones escandentes y uno arbustivo que se comportan como malezas en los cultivos de la región nordeste argentina, pertenecientes a los géneros Ipomoea L., Distimake Raf., Cayaponia Silva Manso, Momordica L. y Aristolochia L., en sus estadios iniciales, desde la emergencia hasta la caída de los cotiledones. Este estudio se basó en observaciones morfológicas, fenológicas y bioecológicas, con la finalidad de facilitar el monitoreo para prevenir casos de enmalezamiento de gravedad en los cultivos y, de esa manera, contribuir a un adecuado plan de Manejo Integrado de Malezas.
MATERIALES Y MÉTODOS
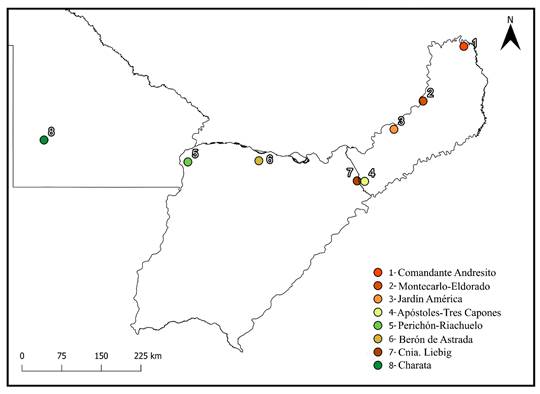
Entre los años 2017 y 2023 se realizaron censos de comunidades vegetales asociadas a diversos cultivos, principalmente yerba mate, té, mandioca, batata, maní, arroz y girasol, en 8 diferentes localidades de la región del nordeste argentino, en las provincias de Misiones, Corrientes y Chaco (Figura 1). En ellas se colectaron especies de malezas y se confeccionaron ejemplares botánicos.
También se cosecharon semillas que fueron conservadas en heladera a 6°C en el Centro de Malezas (FCA-UNNE). Posteriormente, fueron sembradas en macetas de plástico soplado N° 12 de 500 cc de capacidad y, de una especie (Ipomoea indica), se realizó el esquejado; se colocaron en sustrato inerte, con humedad controlada y a temperatura ambiente.
De las plántulas obtenidas (73 en total), algunas fueron herborizadas para su ilustración y las otras siguieron su cultivo en macetas, de las cuales se realizó el registro de la fenología y de la morfología, tomando las dimensiones de las hojas, de los tallos y de los cotiledones, formas y colores de hojas, diámetro de tallos y longitud de cotiledones o brotación. Se analizaron individuos de las especies Ipomoea alba L., I. amnicola Morong., I. cairica (L.) Sweet, I. carnea Jacq. subsp. fistulosa (Mart. ex Choisy) D. F. Austin, I. grandifolia (Dammer) O'Donell, I. indica (Burm.) Merr., I. nil (L.) Roth, I. quamoclit L. y Distimake cissoides (Lam.) Simões & Staples (Convolvulaceae), Cayaponia bonariensis (Mill.) Mart. Crov. y Momordica charantia L. (Cucurbitaceae), y Aristolochia triangularis Cham. (Aristolochiaceae), siendo la mayoría de ellas nativas de la región en estudio y solamente dos especies no lo son.
Se fotografiaron los individuos obtenidos desde la emergencia hasta el momento de caída de los cotiledones. Se procedió a realizar mediciones de los órganos vegetativos: longitud de hipocótilo y epicótilo, longitud y diámetro de tallos y pecíolos, largo y ancho de láminas foliares y de cotiledones. También se registraron características de interés como coloración de los órganos, presencia de zarcillos, pubescencia, látex, forma de cotiledones y hojas. Las mediciones se realizaron con calibre digital Truper (Modelo Caldi 6MP) y flexómetro estándar. Para las fotografías se usó una cámara digital Sony DSC-WX500 y smartphone durante el desarrollo de las plántulas. Las ilustraciones fueron realizadas por la Sra. Liliana Gómez, dibujante del IBONE. Las láminas para las figuras que ilustran el presente trabajo fueron confeccionadas con el programa Adobe Photoshop®. La identificación de las especies se realizó mediante el empleo de bibliografía específica y observando los ejemplares herborizados con lupa Leica ZOOM 2000. De los 12 taxones tratados en el presente trabajo, fueron estudiados todos los ejemplares conservados en el herbario CTES, de los cuales se tomaron las medidas de largo y ancho de hojas y forma de las láminas, además de la información de interés que se menciona en las etiquetas de cada uno de los ejemplares. Los ejemplares testigos de este trabajo fueron depositados en el herbario CTES.
RESULTADOS
Se obtuvieron plántulas y brotaciones de 12 taxones; de ellos, 11 eran escandentes y uno arbustivo. Se confeccionó una clave dicotómica basada principalmente en caracteres morfométricos, como forma, tamaño, color, textura y consistencia de tallos, cotiledones y primeras hojas desplegadas.
Clave para reconocer los 12 taxones en estadíos tempranos/juveniles.
Sin cotiledones. Planta que se propaga exclusivamente de manera asexual, sistema radical adventicio.
1. Ipomoea indica
A´. Con cotiledones. Plantas que se propagan principalmente por semillas. Sistema radical pivotante.
B. Cotiledones hasta 2 cm long. Lámina entera, sésil o brevemente peciolada.
C. Cotiledones sésiles, elíptico-lanceolados. Primer par de hojas opuestas, lámina entera, palmatilobadas, margen aserrado, las siguientes hojas son alternas, 3-5-lobadas. Con zarcillos.
D. Cotiledones de 0,8 cm long x 0,3 cm lat. Hojas membranáceas. Planta con intenso aroma.
2. Momordica charantia
D´. Cotiledones de 0,8-2 cm long x 0,9 cm lat. Hojas papiráceas. Planta casi sin aroma.
3. Cayaponia bonariensis
C´. Cotiledones peciolados, elíptico-redondeados, espatulados. Lámina de la primera hoja verdadera, cordada, luego sagitada o hastada, de ápice obtuso, margen liso. Sin zarcillos.
4. Aristolochia triangularis
B´. Cotiledones mayores a 2 cm de longitud, láminas bilobadas o emarginadas. Siempre largamente pecioladas.
E. Cotiledones con el ápice emarginado. Discoloras.
5. Distimake cissoides
E´. Cotiledones con el ápice bilobado. Concoloras.
F. Cotiledones con lóbulos notablemente anchos, de 4-6 cm lat. Escote no mayor a un cuarto de longitud de la lámina cotiledonar.
6. Ipomoea alba
F´. Cotiledones con lóbulos más angostos, menores a 4 cm lat. Escotadura profunda, mayor a un cuarto de longitud de la lámina cotiledonar.
G. Cotiledón de base notablemente cordada, lámina ancha. Lóbulos de hasta dos veces más largos que anchos. Escote llegando hasta la mitad o poco más de la longitud de la lámina. Las primeras hojas verdaderas son trilobadas (excepcionalmente la 1ra y la 2da pueden iniciar como cordadas, dividiéndose luego).
7. Ipomoea nil
G´. Cotiledón con base no cordada o subcordada, lámina angosta. Lóbulos de dos a cuatro veces más largos que anchos.
H. Lóbulos oblongo-lanceolados, hasta dos veces más largos que anchos. Escote de un medio a un tercio de la longitud de la lámina.
I. Cotiledones grandes (4 a 6 cm long. x 1,5 a 2 cm lat.), algo carnosos. Plántula erguida y robusta.
8. Ipomoea carnea ssp. fistulosa
I´. Cotiledones más pequeños (2 a 3 cm long. x 1 a 1,5 cm lat.), no carnosas. Plántula voluble, frágil.
9. Ipomoea amnicola
H´. Lóbulos lineales, dos a cuatro veces más largos que anchos. Escote llegando a dos tercios de profundidad o más.
J. Lóbulos formando un ángulo agudo entre sí.
K. Lóbulos rectos, ápice agudo y base no auriculada. Primeras hojas con lámina pedada.
10. Ipomoea cairica
K´. Lóbulos con su borde interior algo curvados hacia afuera, ápice agudo y con la base levemente auriculada. Primeras hojas con lámina entera, cordadas.
11. Ipomoea grandifolia
J´. Lóbulos formando un ángulo obtuso entre sí. Nomófilos con limbo profundamente pinnatisecto.
12. Ipomoea quamoclit
DISCUSIÓN
En las Figuras 2 y 3 se aprecian las diferencias exomorfológicas que presentan estos taxones con sus cotiledones y 2 o 3 primeras hojas normales, lo que permite reconocerlos con relativa sencillez. Ipomoea indica (Figura 2A) no tiene cotiledones y sus raíces son adventicias, ya que se propaga vegetativamente. De los 11 taxones restantes, los 2 pertenecientes a la familia Cucurbitaceae (Figura 2B-C y Figura 3E y 3G) poseen cotiledones sésiles o subsésiles, de forma elíptico-lanceolada, menores a 2 cm y de consistencia algo carnosa, en tanto los otros 9 tienen cotiledones peciolados; por sus dimensiones (mayores a 2 cm de longitud), son muy notables aquellos que pertenecen a la familia Convolvulaceae (Figura 2E-L y Fig. 3A-D, 3F e I-K), también se caracterizan por la forma: son anchos, bilobados, con ángulos de los lóbulos característicos. Esto último concuerda con lo mencionado en trabajos anteriores como los de Alarcón Bravo y Torres Reaño (2016) en Perú; H. de Freitas Leitão Filho et al. (1972) en el Estado de São Paulo en Brasil y Carrizo y Sobrero (2001) para Santiago del Estero en Argentina, todos ellos para especies del género Ipomoea y, también, Distimake en las dos primeras obras citadas.
En el presente trabajo se observó, además, la importancia que tiene en las Convolvulaceae la escotadura entre los lóbulos; la profundidad de la misma es muy importante al momento de observar material vegetal de estos taxones. Así, podemos ver que D. cissoides tiene cotiledones apenas emarginados, mientras que las "Ipomoea" tienen lóbulos marcados, destacándose por su tamaño I. alba (Fig. 2F y 3K), cuya escotadura no llega al 25% de la longitud de los lóbulos, mientras que en I. nil, I. carnea subsp. fistulosa e I. amnicola (Fig. 2G-H-I y Fig. 3I, 3J y 3A, respectivamente) tienen el escote llegando al 50% de la longitud de sus lóbulos. De las estudiadas, hay 3 especies con escotadura muy superior al 50% de la longitud de los lóbulos: estas son I. cairica, con lóbulos casi paralelos y lineales (Fig. 2J y Fig. 3C); I. grandifolia, con lóbulos curvados en su borde interno y auriculados en su base (Fig. 2K y Fig. 3B); y finalmente, I. quamoclit (Fig. 2L y Fig. 3D), destacándose además por el característico ángulo obtuso que forman sus lóbulos.
También se observaron los caracteres exomorfológicos de interés en estadios más avanzados, con mayor número de hojas y hasta el momento de caída de los cotiledones. Esto es importante ya que algunos de estos taxones manifiestan un marcado dimorfismo foliar, como ocurre con C. bonariensis: esta tiene hojas algo coriáceas y pueden ser enteras y 3-5-lobadas en la misma planta, o bien tener el primer par de hojas enteras en algunos individuos y trilobadas en otros, lo que podría llevar a confundir este taxón con otro cercano, como M. charantia, que posee hojas 5-lobadas o pedadas, pero aromáticas y de consistencia membranácea. También con hojas pedadas está I. cairica, diferenciándose de las especies de la familia Cucurbitaceae mencionadas por carecer de zarcillos y por tener entero el borde de los lóbulos. Plantas jóvenes de A. triangularis son separadas fácilmente de las demás por presentar láminas primero cordadas y luego algo triangulares, y por las nervaduras tan características y conspicuas.
En las Convolvulaceae hay especies que tienen en sus láminas foliares caracteres constantes y suficientes como para ser reconocidas incluso luego de la caída de los cotiledones, como sucede con I. indica e I. nil que normalmente tienen sus primeras hojas trilobadas, aunque en casos excepcionales pueden presentarse también hojas de láminas cordadas en ambas; son de dimensiones similares, pero las de I. indica son algo discoloras, y las de I. nil tienen una pubescencia amarillenta en el pecíolo. Ipomoea amnicola se separa del resto por sus láminas cordadas, con ápice agudo, base amplia y consistencia algo carnosa. I. quamoclit, desde su primera hoja, tiene láminas pinnatisectas, lo que la caracteriza y separa de los otros taxones. La especie I. alba posee láminas cordadas hasta la caída del cotiledón; luego continúa su crecimiento con hojas que pueden ser de láminas ovadas, agudas u obtusas, con base cordada o 3-5-lobadas.
Las láminas en I. grandifolia inicialmente son cordadas; luego van surgiendo hojas con láminas de bordes angulosos hasta llegar incluso a ser trilobadas en algunos individuos. Aristolochia triangularis muestra primero hojas de forma reniforme para continuar con hojas de aspecto sagitado y membranáceas. Para I. carnea subsp. fistulosa, las plantas observadas mostraron la primera hoja con forma redondeada y con ápice emarginado. Su hoja n.º 7 ya era ovada con ápice agudo y base subcordada a auriculada. Esta especie se diferencia de todas las otras por presentar dos glándulas en el envés sobre el nervio central en la inserción de la lámina, visibles a simple vista desde la cuarta hoja; en las primeras horas de la mañana pueden observarse los exudados a través de esas glándulas.
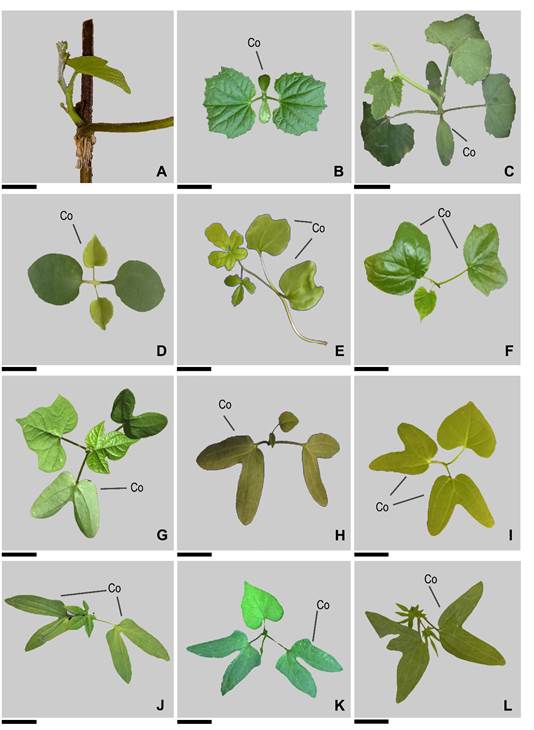
Figura 2 A. Ipomoea indica, mostrando el inicio de su brotación y enraizamiento; B. Momordica charantia; C. Cayaponia bonariensis; D. Aristolochia triangularis; E. Distimake cissoides; F. I. alba; G. I. nil; H. I. carnea ssp. fistulosa; I. I. amnicola; J. I. cairica; K. I. grandifolia; L. I. quamoclit. Escalas: E, K, L (x1); C, D, J (x1,5); A, B, G, H, I (x2) y F (x3): 1 cm. Co: cotiledón.
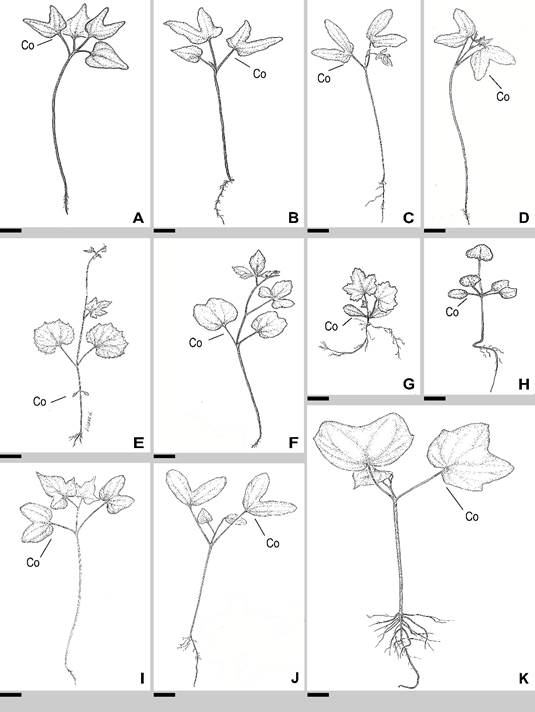
Figura 3 Esquemas ilustrativos de plántulas exhibiendo cotiledones y primer par de hojas verdaderas. A. Ipomoea amnicola; B. I. grandifolia; C. I. cairica; D. I. quamoclit. E. Momordica charantia; F. Distimake cissoides; G. Cayaponia bonariensis; H . Aristolochia triangularis; I. I. nil; J. I. carnea ssp. fistulosa; K. I. alba; Co: cotiledón. Escala: A, B, C, E, F (x2); G, I, J (x2,5); D, K (x3) y H (x1).
Un caso curioso, pero necesario de mencionar, es el de una planta de I. nil cultivada en el Centro de Malezas FCA-UNNE, en la que sus primeras hojas hasta la caída de cotiledones fueron de láminas cordadas, pero a partir de allí, las que fueron sucediéndose tenían láminas trilobadas; por lo tanto, durante algún tiempo se observaron ambas formas de hojas en la misma planta.
Tabla 1 Características exomorfológicas, status, ciclo de vida y forma de vida de las especies estudiadas. N: nativa, Ad: adventicia, I: Introducida, P: perenne, A: Anual.
| Cotiledones | Hojas | Hojas | Zarcillos | Látex | Forma de Vida | |||
|---|---|---|---|---|---|---|---|---|
| Especie | Status | Ciclo | Forma | Forma | Long. x Lat | |||
| Aristolochia triangularis | N | P | elíptica-espatulada | cordadas a triangulares | 4,6 x 3,5 cm | - | - | escandente |
| Distimake cissoides | N | A | base cordada, ápice emarginado | palmatipartidas, 3 a 5 (9) segmentos | 5 x 1,5 cm (el central) | - | - | escandente |
| Ipomoea alba | N | P | ápice emarginado, bordes sinuosos | base cordada | 8,8 x 6 cm | - | sí | escandente |
| Ipomoea amnicola | N | P | bilobados, lóbulos anchos en "V" | cordadas a ovadas | 4,3 x 5,1 cm | - | sí | escandente |
| Ipomoea cairica | N | P | bilobados, lóbulos lineal-lanceolados | pedadas | 4,8 x 2,3 cm | - | sí | escandente |
| Ipomoea carnea ssp fistulosa | N | P | bilobados, lóbulos anchos en "V" | ovadas | 7,5 x 5 cm | - | sí | fanerófito |
| Ipomoea grandifolia | N | A | bilobados, lóbulos lineales | cordadas a 3-lobadas | 5 x 4 cm | - | sí | escandente |
| Ipomoea indica | N | P | - | cordadas a 3-lobadas | 4 x 3,5 cm | - | sí | escandente |
| Ipomoea nil | N | A | bilobados, lóbulos en "U" | 3-lobadas (muy raro cordadas) | 6,5 x 8,2 cm | - | sí | escandente |
| Ipomoea quamoclit | Ad | A | bilobados, lóbulos en ángulo de 90 a 160º | pinnatífidas-pinnatisectas | 4 x 2,8 cm | - | - | escandente |
| Cayaponia bonariensis | N | P | elíptico-lanceolados | ásperas, enteras a 5-lobadas | 4,5 x 4 cm | Sí | - | escandente |
| Momordica charantia | I | A | elíptico-lanceolados | membranáceas 5-lobadas | 6 x 7 cm | Sí | - | escandente |
En la Tabla 1 pueden apreciarse de manera resumida algunas de las principales características exomorfológicas de las especies estudiadas en este trabajo; además, también se mencionan estatus, ciclo y formas de vida de las mismas. Todo esto también contribuye al reconocimiento en campo.
Con esto podemos concluir que las diferencias morfológicas observadas en estos individuos de las especies estudiadas en estado de plántulas y plantas jóvenes son importantes y suficientes para reconocerlas en campo y, con ello, contribuir a diagnosticar adecuadamente situaciones de enmalezamiento surgidas de las labores de relevamiento y monitoreo de malezas, para poder así elegir las adecuadas estrategias de manejo orientadas a la sustentabilidad de los agroecosistemas de la región nordeste de la Argentina.

